

El origen de Homo sapiens
La localización y datación del origen exacto de Homo sapiens siguen siendo objeto de debate, aunque la mayoría de los estudios lo sitúan en el Paleolítico Medio, hace entre 200 y 300 mil años. Existen dos modelos principales que podrían explicar la variabilidad genética actual en los humanos modernos: una sola población que reemplazó al resto (Hu et al 2023) o varias poblaciones que se entremezclaron (Cousin et al. 2025). Los modelos demográficos apuntan además a episodios de aislamiento y fuerte reducción poblacional entre hace 800 mil y un millón y medio de años. Los análisis genéticos sitúan a los humanos “anatómicamente modernos” hace unos 200 mil años únicamente en África, aunque la localización exacta es incierta. El ADN mitocondrial más antiguo y la mayor diversidad genética se observan en las poblaciones actuales del sur de África, especialmente en la etnia Khoe-San, lo que sugiere su proximidad a las poblaciones más antiguas (Chan et al. 2019). El análisis genómico de estas poblaciones indica que la humanidad sufrió una reducción importante del tamaño poblacional hace aproximadamente 100 mil años (Schlebusch et al. 2020).
La salida de África
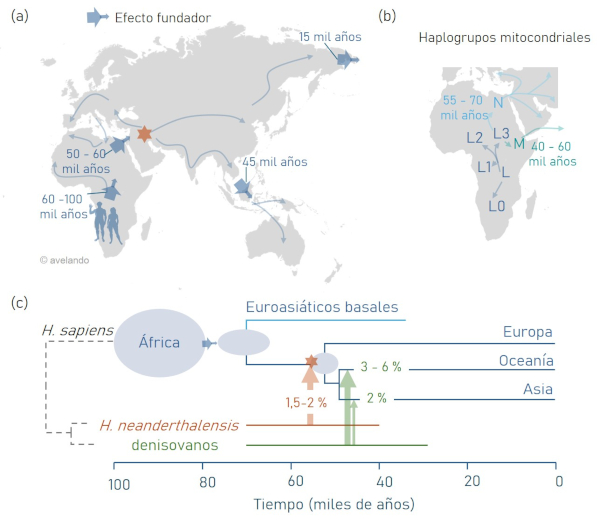
El Homo sapiens ha poblado todo el planeta, pero todas las poblaciones tienen su origen en África. La gran migración fuera de África ocurrió en un único evento hace 50 - 60 mil años. Los fósiles y restos arqueológicos hallados fuera de África y datados antes de estas fechas probablemente corresponden a dispersiones fallidas, sin descendencia detectable en el genoma de humanos arcaicos o actuales. Numerosas evidencias respaldan este origen único y la salida en un solo evento (Bergström et al. 2021), por ejemplo:
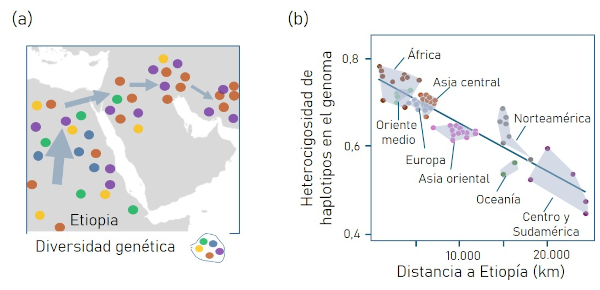
• Los estudios genómicos muestran que las poblaciones no africanas pasaron por un cuello de botella (Figura 1) hace 50–60 mil años, con ascendencia en África oriental. Migraciones posteriores también dejaron huella en la variación genética de las poblaciones humanas (Figura 2a).
• Los análisis de los linajes del ADN mitocondrial y del cromosoma Y confirman un origen africano único y sitúa la diversificación de los linajes no africanos entre 45–55 mil años (Figura 2b).
• Tras salir de África se produjo una mezcla genética con humanos arcaicos: alrededor del 2% del genoma de los humanos no africanos proviene de un único, pero prolongado episodio de entrecruzamiento con neandertales, desde hace 50 mil a 43 mil años (Figura 2c). En su expansión hacia el este, los humanos modernos también se cruzaron con los denisovanos, y el 3,5% del genoma de las poblaciones actuales de Oceanía procedente de este mestizaje ocurrido hace 45–55 mil años.
En el pasado, la especie humana convivió con hasta cinco diferentes linajes de humanos arcaicos (Evolución humana: ver Homínina, el linaje humano) y, como hemos visto, dos de ellos, los neandertales y los denisovanos, dejaron un legado en el acervo genético de nuestra especie. Las variantes genéticas resultantes de estos cruces sufrieron una rápida selección negativa, lo que redujo su tamaño (Iasi et al 2024), pero algunas han perdurado y tienen consecuencias para la salud y diversos rasgos de los humanos modernos (Zeberg et al. 2024). Algunas variantes confieren una mejora en la respuesta inmunitaria y otras han permitido la adaptación a nuevos entornos, como las variantes del gen EPAS1 de los tibetanos, de ascendencia denisovana, que les confiere tolerancia a bajos niveles de oxígeno, y les permite vivir en altitudes elevadas. Por el contrario, otras variantes arcaicas aumentan el riesgo de sufrir diversas enfermedades.
Migraciones, mezcla genética y diferenciación poblacional
Los humanos modernos se expandieron por todo el planeta y, además de mezclarse con humanos arcaicos, mantuvieron una intensa mezcla entre poblaciones. Así, por ejemplo, migraciones recientes (c. cinco mil años) de euroasiáticos a África introdujeron fragmentos del genoma neandertal en poblaciones africanas (Harris et al. 2023). Cuando individuos de diferentes grupos tienen hijos (es decir, se mezclan), estos reciben un juego de cromosomas de cada progenitor y durante la meiosis, la recombinación entre cromosomas genera segmentos de ADN mezclados que heredarán sus descendientes (Figura 3a). La longitud de estos segmentos permite rastrear eventos de mestizaje. La mayoría de las poblaciones actuales proceden de mezclas ocurridas en los últimos 4 mil años que han dejado huellas genéticas, como la expansión mongola, el comercio árabe de esclavos, la expansión bantú, las migraciones del primer milenio d. C. en Europa oriental o el colonialismo europeo, (Hellenthal et al. 2014; ver atlas en http://admixturemap.paintmychromosomes.com/). El mestizaje ha sido una fuerza universal en la historia humana. En la Península Ibérica, por ejemplo, el análisis del genoma de 271 individuos que vivieron desde el Mesolítico hasta la Edad Media reveló una mezcla compleja de individuos de distinta procedencia, centro y norte europeos, del sudeste asiático, norafricanos y mediterráneos del este (Figura 3b). Curiosamente, la huella genética de los primeros pobladores mesolíticos fue desapareciendo hasta casi extinguirse en la Edad Media.

Los humanos presentamos una menor diversidad genética y una mayor homogeneidad que la mayoría de los primates (Figura 4a). Esta baja diferenciación es fruto del origen reciente en una población pequeña de nuestra especie, y por la expansión posterior, marcada por efectos fundadores y flujo génico entre poblaciones. El índice de fijación (FST) en humanos es muy bajo (0,05–0,13; Figura 4), lo que indica que la mayoría (>87%) de la variación genética se encuentra dentro de las poblaciones. Entre poblaciones, esta variación sigue un gradiente geográfico continuo, no discreto. África concentra la mayor diversidad genética, y las poblaciones no africanas solo conservan una fracción de esta diversidad. De hecho, dos individuos de una misma población africana pueden diferir genéticamente más entre sí que un europeo y un asiático, y dos africanos de distintas poblaciones difieren más que un europeo y un africano (Barbujani y Colonza 2010).
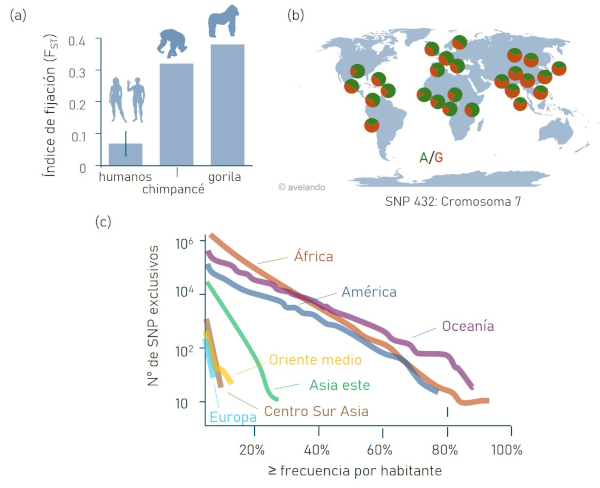
El genoma humano contiene unos 3 mil millones de pares de bases, cuya principal fuente de variación son los polimorfismos de un solo nucleótido (SNP por sus siglas en inglés; Figura 4b). La mayoría de los SNP (≈80%) son cosmopolitas y se encuentran en todos los continentes, aunque con frecuencias distintas, siendo África la región con mayor número de variantes. Un estudio reciente identificó 67 millones de SNP en individuos de 54 poblaciones de todo el mundo y mostró que no existen variantes exclusivas presentes en todos los habitantes de una región o continente (Figura 4c). África, Oceanía y América presentan tan solo unas decenas de variantes exclusivas presentes en más del 70% de sus habitantes, mientras que en Asia y Europa estas son muy escasas y en frecuencias bajas (Figura 4c). En consecuencia, aunque existen diferencias geográficas en el acervo genético, estas solo representan una pequeña parte pequeña de la variación genética y solo pueden detectarse al analizar el conjunto de la variación de un gran número de marcadores. No existen grupos discretos y homogéneos en términos genéticos, por lo que la noción de “razas humanas” es una construcción social sin base biológica.
El color de la piel
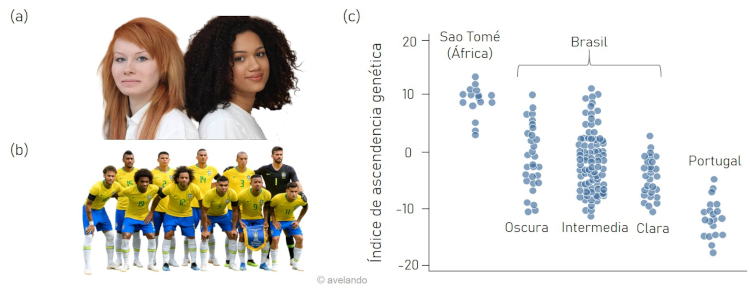
La pigmentación de la piel se ha empleado históricamente para “clasificar racialmente” a los seres humanos, pero esta clasificación no tiene una base biológica. En parte, la variación en la pigmentación está determinada por la acción de un gran número de genes. Los hijos de parejas con distinta pigmentación heredan la mitad de los cromosomas de cada progenitor (Figura 4), pero pueden presentar tonos de piel diferentes pese a compartir la misma ascendencia genética (Figura 5). Esto se debe a que el color de la piel no se transmite de forma conjunta con el resto de los genes, y en poblaciones con un alto mestizaje resulta un mal predictor de la ascendencia genética (Figura 5).
Se han identificado 169 genes relacionados con la pigmentación de la piel (Bajpai et al. 2023), que intervienen en las vías metabólicas que producen dos pigmentos: la eumelanina, responsable de la coloración oscura, y la feomelanina, asociada a tonos rojizos. También influyen la cantidad y distribución de los melanosomas en la piel y las estructuras de queratina de las células epiteliales.
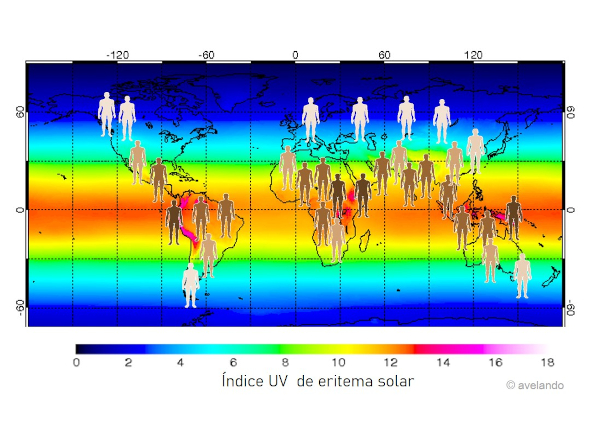
La pigmentación tiene una función adaptativa y guarda una estrecha relación con la radiación UV (Figura 5). Las poblaciones cercanas al ecuador tienden a tener una piel oscura que les protege de la radiación, lo que evita la degradación del ácido fólico y el cáncer de piel. La piel clara en latitudes altas, donde la radiación solar es baja, facilita la síntesis de vitamina D que es dependiente de la radiación. Estudios recientes muestran que los genes asociados a las pigmentaciones claras o las oscuras son diferentes en distintas poblaciones. Así, tonos de piel similares en regiones que están alejadas geográficamente responden a configuraciones genéticas muy distintas que evolucionaron de manera convergente (Liu et al. 2024). En África, donde la variación genética es mayor, se encuentran la mayoría de los genes vinculados tanto a la pigmentación clara como a la oscura, y que se originaron antes de la aparición de los humanos modernos (Crawford et al. 2017). En conjunto, las evidencias indican que la pigmentación humana es el resultado de una compleja historia moldeada por la selección natural, las migraciones y los entrecruzamientos, pero no es un a carácter adecuado como marcador de similitudes o diferencias genéticas.
Para saber más:
Barbujani, G., & Colonna, V. (2010). Human genome diversity: frequently asked questions. Trends in Genetics, 26(7), 285-295.
Bajpai, V.K. et al. (2023). A genome-wide genetic screen uncovers determinants of human pigmentation. Science 381(6658): eade6289.
Bergström, A. et al. (2020). Insights into human genetic variation and population history from 929 diverse genomes. Science 367(6484): eaay5012.
Bergström, A., Stringer, C., Hajdinjak, M., Scerri, E.M.L., & Skoglund, P. (2021). Origins of modern human ancestry. Nature 590(7845): 229–237.
Chan, E.K.F. et al. (2019). Human origins in a southern African palaeo-wetland and first migrations. Nature 575: 185–189.
Cousins, T., Scally, A., & Durbin, R. (2025). A structured coalescent model reveals deep ancestral structure shared by all modern humans. Nat. Genet. 1–9.
Crawford, N.G. et al. (2017). Loci associated with skin pigmentation identified in African populations. Science 358(6365): eaan8433.
Harris, D.N. et al. (2023). Diverse African genomes reveal selection on ancient modern human introgressions in Neanderthals. Curr. Biol. 33(22): 4905–4916.e5.
Hellenthal, G. et al. (2014). A genetic atlas of human admixture history. Science 343(6172): 747–751.
Henn, B.M., Cavalli-Sforza, L.L., & Feldman, M.W. (2012). The great human expansion. Proc. Natl. Acad. Sci. USA 109(44): 17758–17764.
Hu, W. et al. (2023). Genomic inference of a severe human bottleneck during the Early to Middle Pleistocene transition. Science 381: 979–984.
Iasi, L.N.M. et al. (2024). Neandertal ancestry through time: Insights from genomes of ancient and present-day humans. Science 386(6727): eadq3010.
Jobling, M., Hollox, E., Kivisild, T., & Tyler-Smith, C. (2013). Human Evolutionary Genetics. 2nd ed. Garland Science.
Liu, J., Bitsue, H.K., & Yang, Z. (2024). Skin colour: A window into human phenotypic evolution and environmental adaptation. Mol. Ecol. 33(12): e17369.
Olalde, I. et al. (2019). The genomic history of the Iberian Peninsula over the past 8000 years. Science 363(6432): 1230–1234.
Parra, F.C. et al. (2003). Color and genomic ancestry in Brazilians. Proc. Natl. Acad. Sci. USA 100(1): 177–182.
Schlebusch, C.M. et al. (2020). Khoe-San genomes reveal unique variation and confirm the deepest population divergence in Homo sapiens. Mol. Biol. Evol. 37(10): 2944–2954.
Verdu, P. et al. (2014). Patterns of admixture and population structure in native populations of Northwest North America. PLoS Genet. 10(8): e1004530.
Zeberg, H., Jakobsson, M., & Pääbo, S. (2024). The genetic changes that shaped Neandertals, Denisovans, and modern humans. Cell 187(5): 1047–1058.
