

El estudio de la evolución humana
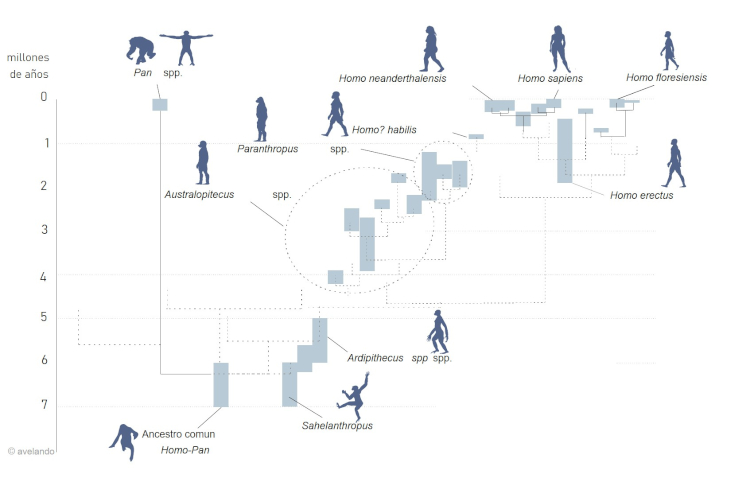
El conocimiento actual sobre la evolución del linaje humano se ha ido perfilando poco a poco, superando obstáculos e ideas preconcebidas. Una de las grandes dificultades estriba en que las evidencias que aporta el registro fósil son incompletas y relativamente escasas, sobre todo cuanto más nos alejamos en el tiempo. Esto hace que, en ocasiones, los científicos planteen hipótesis con pocos datos, que deberán ser puestas a prueba posteriormente cuando se acumulen más evidencias. Sin embargo, muchas hipótesis sin confirmar se transforman en narrativas del pasado, probablemente porque los seres humanos somos contadores de historias, y especialmente de nuestro propio pasado. Estas narrativas se convierten en hechos en muchos libros de texto. Una narrativa muy extendida, por ejemplo, contempla la evolución humana como la de un héroe que se enfrentó a muchos retos, y para superarlos se puso en pie, liberó las manos y desarrolló la inteligencia. Esta narrativa asume una transformación lineal del linaje humano (anagénesis), pero el registro fósil indica que esto no se cumple en el linaje humano, nuestra historia está marcada por la aparición de linajes paralelos y por la extinción de la mayoría de ellos (Figura 1). Los cambios morfológicos ocurridos a lo largo del tiempo en linajes paralelos no implican causalidad en nuestro linaje. Los estudios recientes subrayan la necesidad de reexaminar continuamente los datos paleo-antropológicos y de evitar que las narrativas preconcebidas influyan en la evaluación de los nuevos descubrimientos.
( Siluetas tomadas de https://www.phylopic.org/)
Los comienzos del linaje
La historia del linaje humano comienza con el ancestro común del género Homo y del género Pan, es decir, de los chimpancés y los bonobos (Figura 1). Se ha especulado mucho sobre cómo sería este ancestro común y, en la narrativa histórica, se le ha situado cerca del chimpancé, un simio cuadrúpedo arborícola. El principal problema es que no disponemos de fósiles del linaje de los chimpancés, por lo que desconocemos cómo evolucionaron nuestros parientes vivos más cercanos. El desplazamiento con los nudillos, característico de los gorilas y los chimpancés, se ha utilizado en el pasado como evidencia de que el carácter ancestral de los homínidos es cuadrúpedo. Sin embargo, un análisis detallado de la morfología de estas dos especies indica que las estructuras anatómicas implicadas en esta posición, y en su desarrollo, son completamente distintas, lo que indica que han evolucionado de forma independiente (Kivell & Schmitt 2009): una postura extendida de la muñeca en un entorno arborícola (Pan) frente a una postura columnar de la mano en un entorno terrestre (Gorila). El ancestro común de los linajes Pan-Homo pudo haber tenido una posición erguida con un desplazamiento en suspensión o trepador, similar al de los simios que habitaron en el Mioceno y a los primeros fósiles atribuidos al linaje humano (Almécija et al. 2021). Sin embargo, se necesitan más pruebas, y especialmente fósiles del linaje Pan, para desentrañar cómo fue el linaje común Pan-Homo.
(adaptado de Smithsonian Institution)
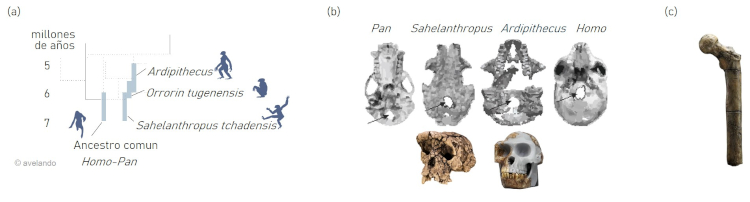
Existen tres géneros extintos (Sahelanthropus, Orrorin, y Ardipithecus) que vivieron entre 7 y 5 millones de años atrás, cerca del periodo en el que se estima que vivió el ancestro común Pan-Homo (Figura 2). Tradicionalmente, estos géneros se han situado como basales en el linaje humano (la subtribu homínina), aunque su posición es incierta, y podrían situarse en un linaje paralelo, e incluso en el linaje basal del género Pan. La especie más antigua es Sahelanthropus tchadensis, que se estima que vivió en el Chad hace 6-7 millones de año, al final del Mioceno. Las características del cráneo se han interpretado como evidencia de una postura algo erguida en esta especie (Figura 3b) y, aunque existe cierta controversia, la morfología de las extremidades inferiores también podría ser compatible con la bipedestación (Daver et al. 2022). Los restos de Orrorin tugenensis, hallados en las montañas de Kenia, tienen entre 5,5 y 6 millones de años de antigüedad. Entre estos restos se encontró un fémur alargado, algo similar a de los géneros Homo y Australopitecus, lo que sugiere que esta especie ya presentaba cierto grado de bipedestación (Richmond & Jungers 2008). Por último, los individuos del género Ardipithecus vivieron en bosques y praderas húmedas de las montañas de Kenia hace entre 4,4 y 5,6 millones de años. La forma de su pelvis, de sus extremidades inferiores y del dedo gordo del pie sugiere que caminaban erguidos por el suelo (White et al. 2009), y la forma de las extremidades superiores sugiere que también se desplazaban por suspensión (Prang et al. 2009). Así, la morfología de estas especies tempranas sugiere que la bipedestación facultativa podría haber sido frecuente en los homíninis basales (Figura 2).
Los australopitecinos
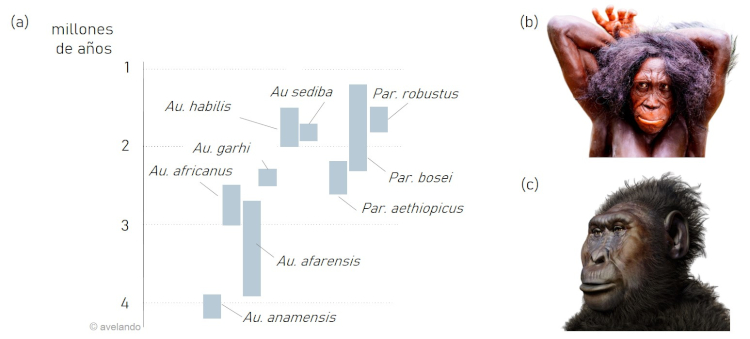
El linaje de los australopitecinos surgió hace 4 millones de años en África. Este linaje de homininos bípedos fue muy exitoso, se diversificó y se adaptó a diferentes ambientes, lo que permitió que numerosas especies de este grupo (entre 8 y 13 especies, según autores) poblaran el Este de Africa durante casi 3 millones de años (Alemseged 2023). Los cambios climáticos ocurridos durante el Plioceno-Pleistoceno favorecieron la expansión y especiación de los australopitecinos en distintas partes de África, lo que dio lugar a diversas especies adaptadas a bosques húmedos y especies adaptadas a pastizales abiertos y secos. La evolución de este grupo conllevó profundos cambios morfológicos, como los que existen entre sus dos géneros extintos: Australopithecus o australopecinos gráciles, y Paranthropus o australopecinos robustos (Figura 3). Se cree que las poblaciones de A. afarensis probablemente se dispersaron hacia el sur de África, donde quedaron aisladas y dieron lugar a la aparición de A. africanus, que a su vez dio lugar a A. sediba. En el Este de África, A. afarensis podría haber dado lugar a A. platyops, A. garhi, Paranthropus y a los primeros Homo (Alemseged 2023).
(Imágenes modificadas de Wikimedia Commons)
Los australopitecus son un grupo de especies bípedas que poseían brazos largos, lo que indica que indican que eran trepadores habituales. Eran omnívoros flexibles, principalmente vegetarianos, que consumían frutas, hojas, raíces y tubérculos, aunque también incorporaban recursos animales que obtenían de la carroña utilizando herramientas primitivas. Esta dieta variada les permitió ocupar una gran variedad de hábitats en África, desde áreas boscosas hasta sabanas más abiertas (Alemseged 2023). El género Homo probablemente surgió de un linaje de australopitecus, pero aún no se ha identificado con claridad su ancestro directo. Los parántropos también eran bípedos, pero evolucionaron de forma muy diferente a su linaje hermano (Figura 3). Poseían un potente aparato masticador con mandíbulas grandes, con molares y premolares gigantescos, un arco cigomático muy ancho y robusto, y una cresta sagital para la inserción de los grandes músculos de la masticación. Estos cambios morfológicos les permitieron triturar vegetales duros, como semillas, raíces y plantas de tipo C4, como juncos y carrizos.
Los primeros Homo
(Imágenes modificadas de Wikimedia Commons y siluetas tomadas de https://www.phylopic.org/)
Homo habilis es una especie que habitó el sur y este de África durante el Pleistoceno inferior (hace entre 2,3 y 1,4 millones de años). Su clasificación dentro del género Homo fue propuesta en 1964, pero ha sido objeto de debate desde entonces. La denominación de habilis proviene de su mayor capacidad craneal en comparación con los australopitecos, y su presencia en yacimientos asociados a herramientas líticas. Algunos paleoantropólogos sugieren que debería ser incluido en el género Australopithecus, o incluso que se debería crear un género separado para él y Homo rudolfensis, que podrían representar la misma especie. La coexistencia de habilis y rudolfensis con Homo erectus, evidenciada por el hallazgo de Turkana Boy (KNM-WT 15000) datado en 1,6 millones de años, cuestiona la noción de que habilis fue un ancestro directo de erectus (Spoor et al. 2007). Por ello, muchos antropólogos actuales defienden reservar el género Homo exclusivamente para Homo erectus y sus descendientes, dado que representa el inicio del linaje humano que culmina en Homo sapiens. Esta reconfiguración permitiría una clasificación más precisa de los homíninos de la época y resolvería las inconsistencias en la definición del género Homo.
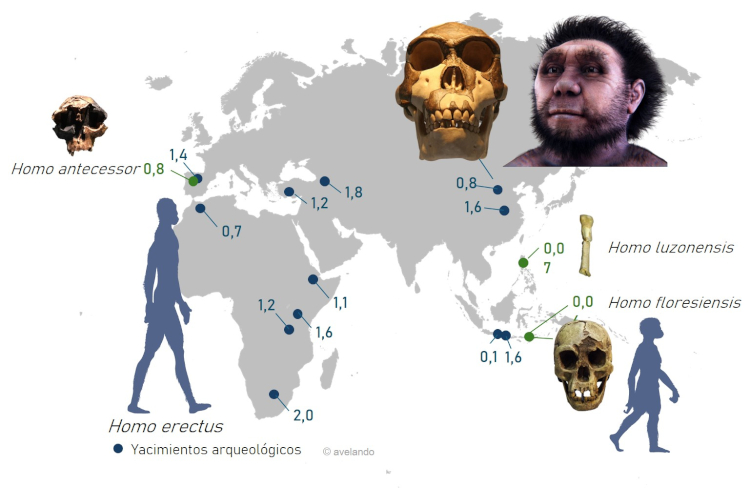
El Homo erectus es el homínino extinto más antiguo que podemos atribuir con certeza dentro del linaje del ser humano moderno, Homo sapiens. Los erectus surgieron en África, y se expandieron por Europa y Asia, donde vivieron durante un largo periodo de tiempo desde hace 2,04 millones de años hasta hace tan sólo 117.000 años (Figura 4). Los fósiles atribuidos a H. erectus presentan diferencias morfológicas tanto temporales como geográficas, por lo que algunos autores los dividen en hasta seis grupos de subespecies o especies (erectus, pekinensis, soloensis, ergaster, georgicus, tautavelensis). En África los erectus convivieron con hasta cuatro linajes de especies distintas de homininos (incluidos los parántropos, los australopitecos y los habilis), aunque se desconoce si interaccionaron con ellos (Herries et al. 2020). Los erectus caminaban totalmente erguidos y su aspecto y tamaño eran similares a los de los humanos actuales, aunque eran más compactos y robustos (Bastir et al. 2020) y tenían un volumen craneal de menor tamaño que el nuestro. Los erectus fueron la primera especie en fabricar hachas de mano (herramientas achelenses), que probablemente utilizaban para despiezar la carne. Algunas evidencias sugieren que también fueron los primeros en usar y controlar el fuego, lo que pudo suponer una gran ventaja evolutiva. Actualmente se cree que las poblaciones de erectus en las islas del sudeste asiático evolucionaron a especies de menor tamaño corporal y cerebral, como Homo floresiensis y Homo luzonensis (Figura 4), pero se necesitan más evidencias que corroboren esta hipótesis.
En las últimas décadas la comprensión del linaje de los humanos modernos se ha fortalecido gracias a los estudios de paleogenómica, especialmente mediante el análisis del genoma arcaico de especies y poblaciones extintas. Uno de los fundadores de esta disciplina es Svante Pääbo, galardonado con el Premio Nobel de Medicina en 2022. En 1997, consiguió extraer secuencias de ADN mitocondrial de un individuo neandertal y en 2010 publicó el primer borrador del genoma de los neandertales, extintos hace 30.000 años. Tras estos primeros avances, disponemos de varios genomas de alta calidad de neandertales y de otro grupo arcaico del que apenas se han encontrado fósiles, pero que constituye un grupo diferenciado: los denisovanos. A esto se ha añadido la secuenciación de los genomas de numerosos humanos modernos que vivieron hace miles de años.
Los hallazgos fósiles y genéticos indican que entre 800 y 900 mil años atrás surgió en África el Homo heidelbergensis, probablemente descendiente del Homo erectus (ssp. ergaster), con una población muy reducida (Figura 5). Durante un periodo de inestabilidad climática se expandió por África y Eurasia, pero nuevas oscilaciones fragmentaron su distribución en dos áreas: Eurasia y el sur de África (Timmermann et al. 2022). De las poblaciones de estas áreas se habrían derivado los denisovanos-neandertales y los humanos modernos, respectivamente (Figura 5), en concordancia con las estimaciones genómicas que sitúan su divergencia en 550–764 mil años (Prüfer et al. 2014). Los heidelbergensis eran altos y robustos, con un cráneo grande pero aplanado (Figura 5). Vivían en pequeños grupos sociales donde desarrollaron innovaciones tecnológicas como la fabricación de herramientas, el control del fuego, la confección de vestimenta y el uso de cuevas como refugio, lo que favoreció su adaptación a entornos cambiantes. Posiblemente fueron los primeros en mostrar conductas simbólicas y cuidado de enfermos.
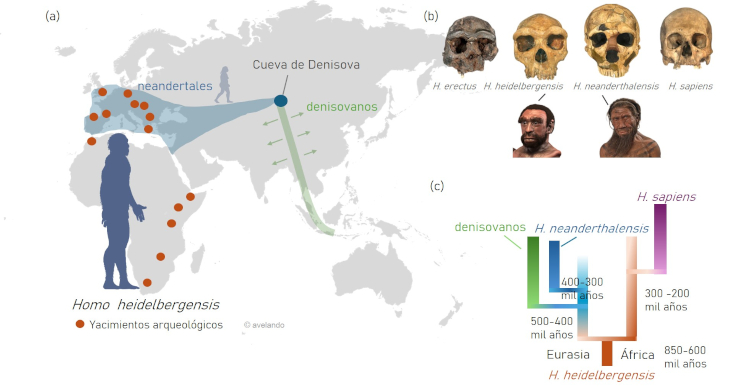
(redibujado de Timmermann et al. 2022))
Neandertales y denisovanos
Los neandertales, Homo neanderthalensis, descendientes de los Homo heidelbergensis europeos, surgieron en Eurasia hace entre 400 y 300 mil años y se extinguieron hace unos 40.000 (Figura 5). Eran individuos robustos, adaptados al frío, con una estatura similar a la de los humanos modernos pero un volumen cerebral mayor (Figura 5). Diversas evidencias apuntan a que desarrollaron un elaborado modo de vida: desarrollaron complejas herramientas que utilizaban para cazar grandes mamíferos como los mamuts, utilizaron el fuego, procesaron pieles para confeccionar vestimenta, construyeron refugios y cuidaron de los enfermos. Asimismo, existen indicios de prácticas simbólicas, como ceremonias funerarias y, aunque todavía está en discusión, es posible que realizaran las pinturas rupestres más antiguas conocidas (Hoffmann et al. 2018), Los estudios genómicos revelan que vivían en pequeños grupos con alto grado de consanguinidad; en Siberia, el análisis de trece individuos mostró que los varones tendían a permanecer en el grupo natal, mientras que las mujeres eran más móviles (Skov et al. 2022). Además, investigaciones genéticas sobre el receptor de melanocortina indican que algunos individuos presentaban mutaciones asociadas a tonalidades rojizas del cabello (Lalueza-Fox et al. 2007).
En 2010, el equipo de Svante Pääbo secuenció el ADN mitocondrial de un hueso de meñique hallado en la cueva de Denisova (Siberia), identificando un linaje humano distinto, emparentado con los neandertales: los “denisovanos”. Los escasos fósiles atribuidos a este grupo muestran molares y mandíbulas más grandes y robustas que los de los neandertales. En 2012 se publicó el primer genoma denisovano, obtenido de una niña que vivió hace entre 60 y 80 mil años (Meyer et al. 2012). Aunque su denominación científica aún no está definida, los análisis genéticos indican que este linaje se separó de los neandertales hace entre 600 y 400 mil años y que se distribuyó ampliamente desde Siberia hasta el sudeste asiático, incluyendo la meseta tibetana. En 2025 se logró analizar el perfil proteico y el ADN mitocondrial de un cráneo conocido como el “hombre dragón”, encontrado en Harbin (China) y datado en 140 mil años, que podría representar el primer cráneo denisovano identificado (Lewis 2025).
El estudio de los genomas revela múltiples episodios de hibridación entre neandertales, denisovanos y humanos modernos. Un caso singular es “Denny”, un adolescente que vivió hace 50 mil años y cuyo genoma muestra madre neandertal y padre denisovano. Pese a estos cruces, los tres linajes divergieron de un ancestro común hace cientos de miles de años (Figura 5), evolucionando de manera independiente (especies evolutivas), con rasgos morfológicos y genéticos distintos (especies filogenéticas). Además, la baja fertilidad de híbridos entre humanos modernos y neandertales —evidenciada por la ausencia de ADN neandertal en el cromosoma X (Iasi et al 2024) y en genes expresados en los testículos (Sankararaman et al. 2014)— indica barreras reproductivas. Estos casos de introgresión genética entre especies cercanas son muy frecuentes en la naturaleza (Dowling & Secor 1997) y constituyen una fuente clave de variación genética en poblaciones naturales.
Para saber más:
Alemseged, Z. (2023). Reappraising the palaeobiology of Australopithecus. Nature, 617(7959), 45-54.
Almécija, S., Hammond, A.S., Thompson, N.E., Pugh, K.D., Moyà-Solà, S., & Alba, D.M. (2021). Fossil apes and human evolution. Science, 372(6542), eabb4363.
Bastir, M. et al. (2020). Rib cage anatomy in Homo erectus suggests a recent evolutionary origin of modern human body shape. Nat. Ecol. Evol. 4, 1178–1187.
Berna, F. et al. (2012). Microstratigraphic evidence of in situ fire in the Acheulean strata of Wonderwerk Cave, Northern Cape province, South Africa. Proc. Natl. Acad. Sci. USA 109(20): E1215–E1220.
Daver, G. et al. (2022). Postcranial evidence of late Miocene hominin bipedalism in Chad. Nature 609(7925): 94–100.
Dowling, T.E., & Secor, C.L. (1997). The role of hybridization and introgression in the diversification of animals. Annu. Rev. Ecol. Syst. 28: 593–619.
Herries, A.I.R. et al. (2020). Contemporaneity of Australopithecus, Paranthropus, and early Homo erectus in South Africa. Science 368(6486): eaaw7293.
Hoffmann, D.L. et al. (2018). U-Th dating of carbonate crusts reveals Neandertal origin of Iberian cave art. Science 359(6378): 912–915.
Iasi, L.N.M. et al. (2024). Neandertal ancestry through time: Insights from genomes of ancient and present-day humans. Science 386(6727): eadq3010.
Kivell, T.L., & Schmitt, D. (2009). Independent evolution of knuckle-walking in African apes shows that humans did not evolve from a knuckle-walking ancestor. Proc. Natl. Acad. Sci. USA 106(34): 14241–14246.
Lalueza-Fox, C. et al. (2007). A melanocortin 1 receptor allele suggests varying pigmentation among Neanderthals. Science 318(5855): 1453–1455.
Lewis, D. (2025). First ever skull from ‘Denisovan’ reveals what ancient people looked like. Nature 642(8069): 848–849.
Meyer, M. et al. (2012). A high-coverage genome sequence from an archaic Denisovan individual. Science 338(6104): 222–226.
Prang, T.C., Ramirez, K., Grabowski, M., & Williams, S.A. (2021). Ardipithecus hand provides evidence that humans and chimpanzees evolved from an ancestor with suspensory adaptations. Sci. Adv. 7(9): eabf2474.
Prüfer, K. et al. (2014). The complete genome sequence of a Neanderthal from the Altai Mountains. Nature 505(7481): 43–49.
Richmond, B.G., & Jungers, W.L. (2008). Orrorin tugenensis femoral morphology and the evolution of hominin bipedalism. Science 319(5870): 1662–1665.
Sankararaman, S. et al. (2014). The genomic landscape of Neanderthal ancestry in present-day humans. Nature 507(7492): 354–357.
Skov, L. et al. (2022). Genetic insights into the social organization of Neanderthals. Nature 610(7932): 519–525.
Su, D.F. (2013). Nature Education Knowledge 4(4): 11.
White, T.D. et al. (2009). Ardipithecus ramidus and the paleobiology of early hominids. Science 326(5949).